Les télomères sont les extrémités protectrices des chromosomes eucaryotes. Ils sont constitués de séquences répétées riches en GT, transcrites en ARN non codants (TERRA) et liées par des protéines spécifiques. Ces protéines protègent les extrémités des chromosomes contre les fusions et la dégradation, principalement en empêchant la réponse aux dommages de l’ADN (DDR) de s’exercer pleinement aux télomères. La réplication conventionnelle de l’ADN ne pouvant copier entièrement les extrémités des chromosomes, des séquences télomériques sont perdues à chaque passage de la fourche de réplication, puis restaurées par une enzyme, la télomérase. En l’absence de télomérase, les télomères raccourcissent progressivement à chaque division cellulaire, jusqu’à l’activation de la DDR et l’arrêt du cycle cellulaire : c’est la sénescence réplicative. Chez l’humain et de nombreux autres vertébrés, la plupart des tissus somatiques n’expriment pas la télomérase. Le raccourcissement des télomères constitue donc un mécanisme intrinsèque qui limite la capacité de prolifération des cellules. Les cellules cancéreuses échappent à cette limite : elles contournent la signalisation de la sénescence, puis compensent l’érosion télomérique en réactivant la télomérase ou par un mécanisme alternatif d’allongement des télomères (ALT, Alternative Lengthening of Telomeres). Les mécanismes qui sous-tendent ces transitions restent mal compris.
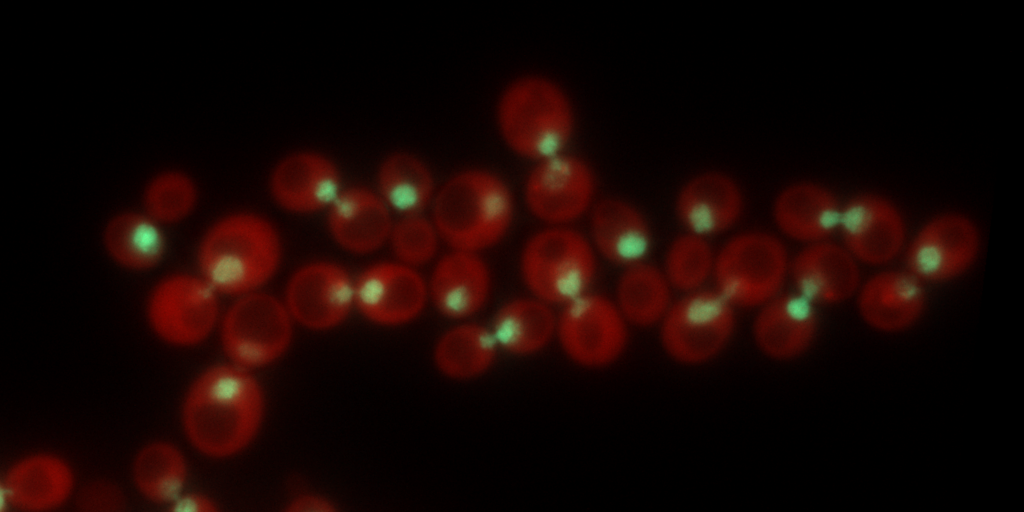
L’hétérogénéité constitue une difficulté majeure dans l’étude de la biologie des télomères. Au sein d’une même cellule, les télomères diffèrent par leur longueur et leur état. D’une cellule à l’autre, le moment d’entrée en sénescence réplicative et ses caractéristiques varient considérablement. Or, moyenner des données issues de populations hétérogènes peut conduire à des modèles biaisés, qui perdurent ensuite comme des dogmes. Notre équipe relève ce défi en étudiant les télomères à l’échelle du télomère unique et de la cellule unique, en utilisant comme modèle la levure Saccharomyces cerevisiae. Nous associons génétique moléculaire, microfluidique, imagerie sur cellules vivantes et modélisation mathématique.
Principales contributions
Le problème de la réplication des extrémités de l’ADN. Avec une résolution au nucléotide-près, nous avons décrit comment les télomères répliqués par le brin précoce et par le brin tardif sont répliqués puis maturés. Un seul des deux télomères sœurs raccourcit à chaque réplication.
La sénescence à l’échelle de la cellule unique. En collaboration avec Gilles Charvin (Université de Strasbourg), nous avons adapté des dispositifs microfluidiques pour suivre des lignées de levures dépourvues de télomérase, depuis la perte de la télomérase jusqu’à la mort cellulaire. La sénescence paraît graduelle à l’échelle de la population, mais elle est abrupte et très hétérogène dans les cellules individuelles. Nous avons également mis en évidence un phénotype inattendu : des arrêts du cycle cellulaire fréquents et réversibles, dus à l’adaptation au point de contrôle des dommages à l’ADN. Ce phénotype favorise l’instabilité génomique.
La modélisation mathématique de la sénescence. Avec Marie Doumic (INRIA, École polytechnique) et Zhou Xu (Sorbonne Université), nous avons construit des modèles montrant qu’une grande partie de l’hétérogénéité de la sénescence s’explique par trois facteurs : la variabilité de la longueur initiale des télomères, l’asymétrie de leur raccourcissement, et un seuil critique de longueur atteint par le premier télomère devenu trop court.
Le télomère le plus court, « maillon faible ». Nous avons développé FinalCut, un système fondé sur CRISPR/Cas9 qui permet de créer et de suivre un télomère unique, spécifiquement raccourci. Grâce à cet outil, nous avons montré que le télomère le plus court déclenche un point de contrôle permanent des dommages à l’ADN lorsqu’il passe sous une longueur critique. Nous avons également montré que de rares réarrangements génomiques de type ALT surviennent en cis, à proximité de ce télomère. Ces résultats relient directement sénescence, instabilité génomique et ALT.
Les télomères et le reste de la cellule. Les cellules sénescentes dépourvues de télomérase présentent une élévation des espèces réactives de l’oxygène et une activation de la kinase de stress Hog1 (l’équivalent chez la levure de la MAPK p38 des mammifères). Le stress oxydant apparaît ainsi comme une signature conservée des cellules dépourvues de télomérase.
Objectifs actuels
Nos objectifs sont :
- comprendre comment la réplication et la réparation des télomères déterminent leur vitesse de raccourcissement, dans des télomères normaux ou altérés ;
- relier la structure et la composition protéique de télomères individuels à l’activation des points de contrôle et au devenir cellulaire ;
- explorer comment l’érosion des télomères remodèle l’ensemble de la cellule (métabolisme, organites, stabilité du génome) au cours de la sénescence et de l’émergence des survivants.
À long terme, nous souhaitons établir un cadre moléculaire et quantitatif permettant de comprendre la variabilité des télomères et de la sénescence, ainsi que ses conséquences pour le vieillissement cellulaire, le cancer et l’évolution des génomes eucaryotes.
Financements actuels
Anciens financements